全国服务热线: 15801217100
全国服务热线: 15801217100

社会经济地位(socioeconomic status, SES)与健康结局的关联,是流行病学中被反复验证的结论之一。低 SES 人群的感染性疾病负担更重,疫苗接种后的抗体应答与细胞免疫应答普遍弱于高 SES 人群。对这一现象的解释多集中在医疗可及性、生活方式与慢性心理压力三个层面,均属个体之外的环境因素。至于社会处境在细胞层面留下了什么可测量的痕迹,目前缺乏直接证据。
该预印本采用的思路是绕开组学,直接测量细胞的两项速率:每个免疫亚群当前合成 RNA 的速度(转录),以及合成蛋白质的速度(翻译)。测速用的两个化学探针分别标记新生 RNA 与新生蛋白,两者共用同一套点击化学反应,因而可以在同一管样本、同一张流式图上同时读出。作者随后在人群队列中比较了这两项速率在高低 SES 组之间的差异。
需要说明三点。第一,该文为预印本,尚未完成同行评议。第二,发现队列每组 7–8 人,验证队列每组 10 人,属于小样本。第三,研究为横断面设计,只能给关联,不能给因果。以下所述数据和结论均出自原文。
三个队列,年龄与性别匹配:
SES 由问卷合成,纳入收入、教育、住房条件、环境暴露与医疗可及性五项。荷兰队列未被放入 SES 梯度,而是单独作为参照,原因是国别差异与地位差异在统计上难以完全分离。
肝素钠抗凝外周血,采血后 4 小时内完成 Ficoll 密度梯度离心分离 PBMC。冻存液为 90% 热灭活 FCS 加 10% DMSO,另含青霉素/链霉素与丙酮酸/谷氨酸;液氮保存,跨国际冷链运输。
复苏时取 10×106 PBMC,于 RPMI 加 20% 热灭活 FCS、37 ℃ 复苏,洗两次,再于 RPMI 加 10% 热灭活 FCS 中静置 1 小时。静置的目的是让细胞从冻存与冻融应激中恢复,使后续代谢读数反映细胞自身状态而非复苏过程。
|
|
|
|
|
|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
βES 来自 THRONCAT 方法(Ignacio et al., Nat Commun 2023;14:3367)。该文将其定性为苏氨酸(threonine)的生物正交类似物:结构上与 L-苏氨酸相近,以端炔基取代 β-碳上的甲基,可经苏氨酸 tRNA 合成酶途径掺入新生肽链。该化合物最早于 1986 年从 Streptomyces cattleya 中分离,当时即被鉴定为 L-苏氨酸的抗代谢物。与甲硫氨酸类似物(AHA、HPG)相比,THRONCAT 的主要优势是无需去除培养基中的甲硫氨酸即可有效掺入,且细胞毒性较低。
需要指出,本预印本原文将其称为丝氨酸类似物,与 THRONCAT 原文的表述不一致。该化合物的 IUPAC 名称为 3-乙炔基丝氨酸,两个名称指向同一分子;差异在于强调其结构母体(丝氨酸)还是其生物学识别(苏氨酸类似物)。从掺入机制看,后一定性更贴近实际过程。引用时建议按方法学原始文献表述,并注明这一出入。
两个探针都带端炔基,因而可共用铜催化叠氮-炔环加成(CuAAC)反应,接同一个荧光基团 AZDye 647 Azide(Vector Labs CCT-1482)。这一步的设计意图是节省通道:点击化学只用掉 647 一个检测通道,其余 40 余个通道留给抗体,使表型信息与代谢信息在同一管中平行采集。
过夜刺激 16 小时,同时加入四种激动剂:CpG-ODN2006(TLR9,1 µM)、LPS(TLR4,100 ng/mL)、抗 CD3(1 µg/mL)、抗 CD28(1 µg/mL)。其目的是同时激活 BCR/TLR、TLR4 与 TCR 共刺激通路。静息组与刺激组均做代谢标记,从而把基线代谢水平与激活后的应答能力分开测量。
流程依次为:活细胞表面染色(Zombie Violet 活死染料 1:2000,Fc 阻断,表面抗体 cocktail,室温 15 min)→ 2% 超纯多聚甲醛固定 → 1× eBioscience Perm Buffer 透膜(室温 15 min)→ Click 反应(CuSO4 0.5 mM、THPTA 2 mM、抗坏血酸钠 10 mM、AZDye 647 Azide 0.25 µM,50 µL/孔,室温 30 min)→ 胞内染色(CD3 Spark Blue 574,1:50)→ Cytek Aurora 五激光光谱流式上机(SpectroFlo v3.0)。
需要强调,上述 Click 反应在固定、透膜之后进行。这与部分活细胞成像方案的顺序不同:后者若将点击反应置于固定之前,在活细胞中进行,铜离子会影响细胞状态。做代谢速率定量时,固定后再行点击是较稳妥的选择。
两项对照分别对应转录抑制与翻译抑制,各自把相应探针的信号压到检测下限。这一结果支持将 5'EU 与 βES 的荧光强度分别作为转录速率与翻译速率的读数,而非泛化的 RNA 或蛋白含量。
SpectroFlo 解混;FlowJo v10.10 加 OMIQ 手动门控划分 38 个免疫亚群;CD45 四色条形码(PE-Cy7 / Pacific Blue / AF700 / BB551)拆分,每批多重 15 个样本,含 buffy coat 参考样,R flowCore 处理,CytoNorm 进行批间校正;PE 信号扣除同型对照背景,仅保留 MFI 大于 1000 的标志物,导出 MFI 与 P90(第 90 百分位,应对偏态分布);FlowSOM 分簇(B 细胞 27 簇、髓系 30 簇、T 细胞 50 簇),UMAP 可视化。
统计采用 limma 框架:log 转换后的 MFI 对组别与批协变量回归,按亚群细胞数加权;组别设为有序变量以检验单调趋势;Benjamini-Hochberg 校正,FDR 小于 0.05。补体数据用 Kruskal-Wallis 检验加 Wilcoxon 事后检验。
发现队列共鉴定 108 个与 SES 相关的表面标志物,其中 91 个与高 SES 相关、17 个与低 SES 相关,并在独立验证队列的靶向 panel 中复现。
低 SES 组的特征较为一致:
与疫苗学直接相关的一项结果是:低 SES 组 naïve B 细胞的 CXCR5 与 IL-21R 显著下调。这两个分子分别参与 B 细胞向滤泡归巢与存活信号传递,是生发中心反应的必需条件。该结果提示,低 SES 人群疫苗应答偏弱可能部分源于 B 细胞进入生发中心的门槛本身较高,而不仅取决于接种可及性与合并症。
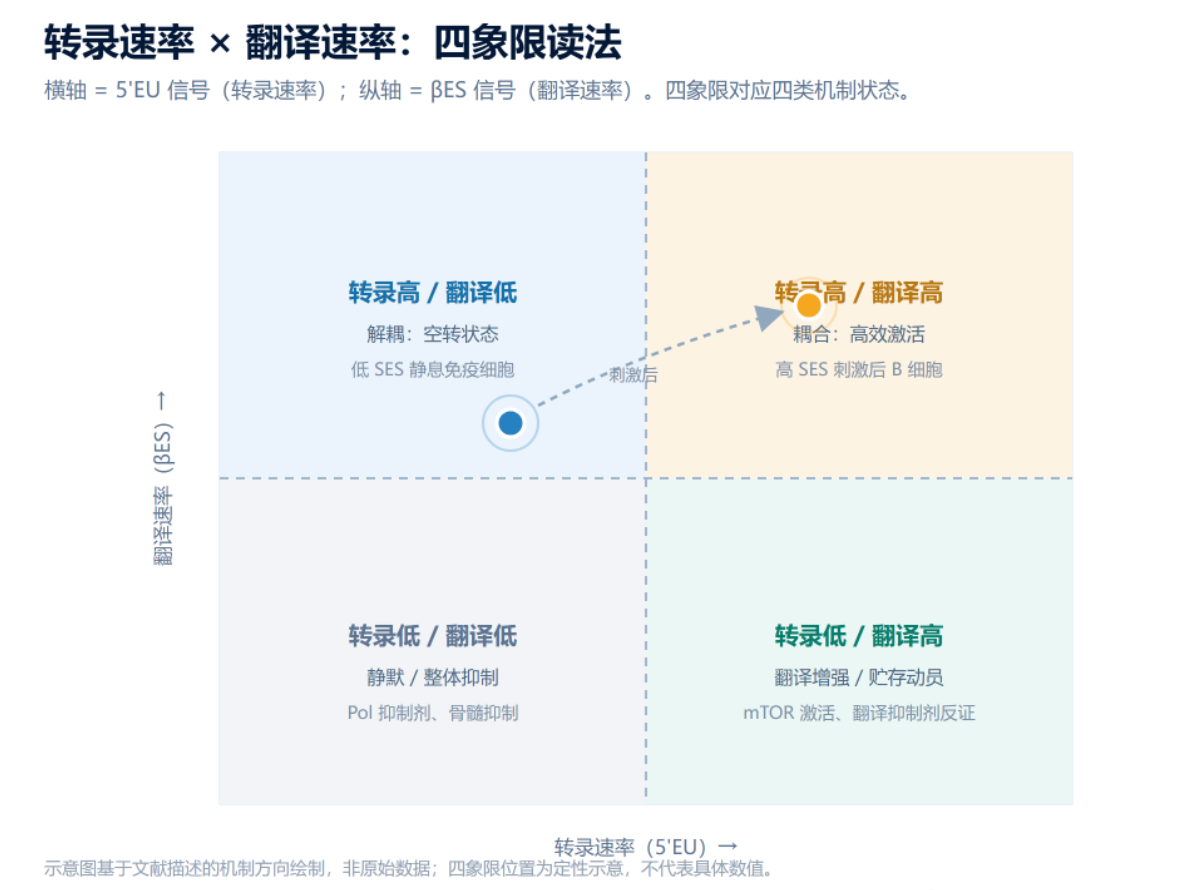
图 1 转录速率与翻译速率的四象限关系(示意图,非原始数据)
|
|
|
|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
将四行合读:低 SES 组静息状态下转录速率偏高而翻译速率不变;受刺激后转录诱导反而更弱,蛋白合成的组间差距进一步扩大。作者将这一状态命名为转录-翻译解耦(transcriptional–translational uncoupling)。
这一结论之所以不能由单一组学得到,是因为两类组学测的都是终点存量:RNA-seq 看到的是稳态转录本,其变化可被解释为转录增强,也可能是降解减慢;质谱蛋白组看到的是蛋白丰度,短期内的变化幅度受半衰期限制。合成速率与存量之间隔着一个降解项,只有把速率本身测出来,才能在二者之间作出区分。
单篇小样本预印本的证据强度有限。以下两项研究不与本文共用同一批样本,但分别从上游机制与技术延伸两个方向提供了参照。
(1)社会地位的神经免疫通路(Xiong H, et al. Cell Res 2026)
浙江大学胡海岚团队与阿姆斯特丹大学 Helmut W. Kessels 团队于 2026 年 3 月 23 日在 Cell Research 发表 Social status impacts T-cell responses through synapse strength in the prefrontal cortex(DOI: 10.1038/s41422-026-01235-7)。
四只雄性 C57BL/6 小鼠经钻管实验(tube test)形成稳定的 1–4 级社会等级,随后接种 DNA 疫苗。免疫后第 12 天,排名第 2 的个体抗原特异性 CD8+ T 细胞比例显著高于其他等级,平均高出约 60%;换用 OVA 抗原后趋势一致,说明并非单一疫苗所致。该优势与体重、睾酮及皮质酮水平无关。
机制定位于背内侧前额叶皮层(dmPFC)。GluA1(AMPA 受体亚基)缺失小鼠仍能形成等级,但等级间的 T 细胞应答差异消失;在 dmPFC 局部用 AAV 恢复 GluA1 表达,可增强该区第 5 层锥体神经元的兴奋性突触传递,并提升疫苗诱导的 T 细胞应答;单笼饲养、无社交竞争的个体中该效应依然存在。化学遗传学激活 dmPFC 兴奋性神经元同样增强应答,且不能被 β 肾上腺素受体阻断消除。脾脏 CD8+ T 细胞的转录组显示 p38 MAPK 通路激活、热休克蛋白基因上调、增殖与存活相关程序增强。
该文的意义在于给出了一条从社会等级到外周 T 细胞应答的因果链,且效应可定位到具体脑区与具体突触性质。对本预印本而言,它提出了一个可检验的问题:低 SES 免疫细胞的转录-翻译解耦,是否也受神经或内分泌输入调节。用 5'EU/βES 在体外测量分离 T 细胞的耦合效率,可以排除神经与循环激素的干扰,只保留细胞自身的设定,这一实验在技术上没有障碍。
(2)单细胞层面的同类现象(Ma S, et al. Cell 2025)
清华大学沈晓骅团队于 2025 年 9 月 26 日在 Cell 发表 scFLUENT-seq(single-cell full-length EU-labeled nascent RNA sequencing),以 10 分钟 EU 短标记结合单细胞全长新生 RNA 测序(DOI: 10.1016/j.cell.2025.09.003)。
主要结果:单个细胞在同一时刻转录的基因组比例仅为 0.02%–3.1%,而 bulk 样本中该比例超过 80%。基因间区、尤其是异染色质区的转录广泛存在且具随机性;启动子反义转录与基因正文转录很少在同一细胞中同时发生;远端基因间转录与转录多样性相关,作者将其视为细胞可塑性的标志。另有一项与本文呼应:bulk 水平上 RNA 合成与降解是耦合的,但单细胞水平上单个 mRNA 的转录与降解协调性很差,作者推测存在噪声缓冲机制。
两项研究的共同点是,都把耦合这一通常被默认成立的前提,当作需要测量的对象。本预印本在亚群平均值的尺度上观察到转录与翻译脱钩,scFLUENT-seq 在单细胞尺度上观察到转录与降解脱钩。
EU 是 5 位带乙炔基的尿苷类似物。加入培养基后,细胞经核苷补救途径将其磷酸化为三磷酸形式,RNA 聚合酶不区分 EU 与尿苷,将其掺入正在合成的所有 RNA,包括 Pol I 的 rRNA 前体、Pol II 的 mRNA 与非编码 RNA、Pol III 的 tRNA 与 5S rRNA。Jao 与 Salic(PNAS 2008)最初报道,哺乳动物细胞中平均每 35 个尿苷残基掺入 1 个 EU,并证明 EU 不是核糖核苷酸还原酶的良底物,因而在哺乳动物细胞中不显著标记 DNA。
标记窗口由实验者设定,这是该方法区别于 run-on 类技术的核心:掺入 15 分钟,测得的就是这 15 分钟内的转录产量;既不需要 ActD 抑制新转录起始,也不需要分离细胞核。
CuAAC 反应把叠氮基团共价接到乙炔基上,接不同的报告基团通向不同的检测方式:
对本预印本的应用而言,成像与流式这两个出口的价值在于给出分布而非均值。低 SES 组转录升高而翻译不变,是一个分布层面的偏移,只有在单细胞或单亚群水平上才可见。
原研究的流程可以按检测目的拆成四条路线,实施难度递增。以下参数为文献复现的常见起点,具体条件需按自身体系摸索。
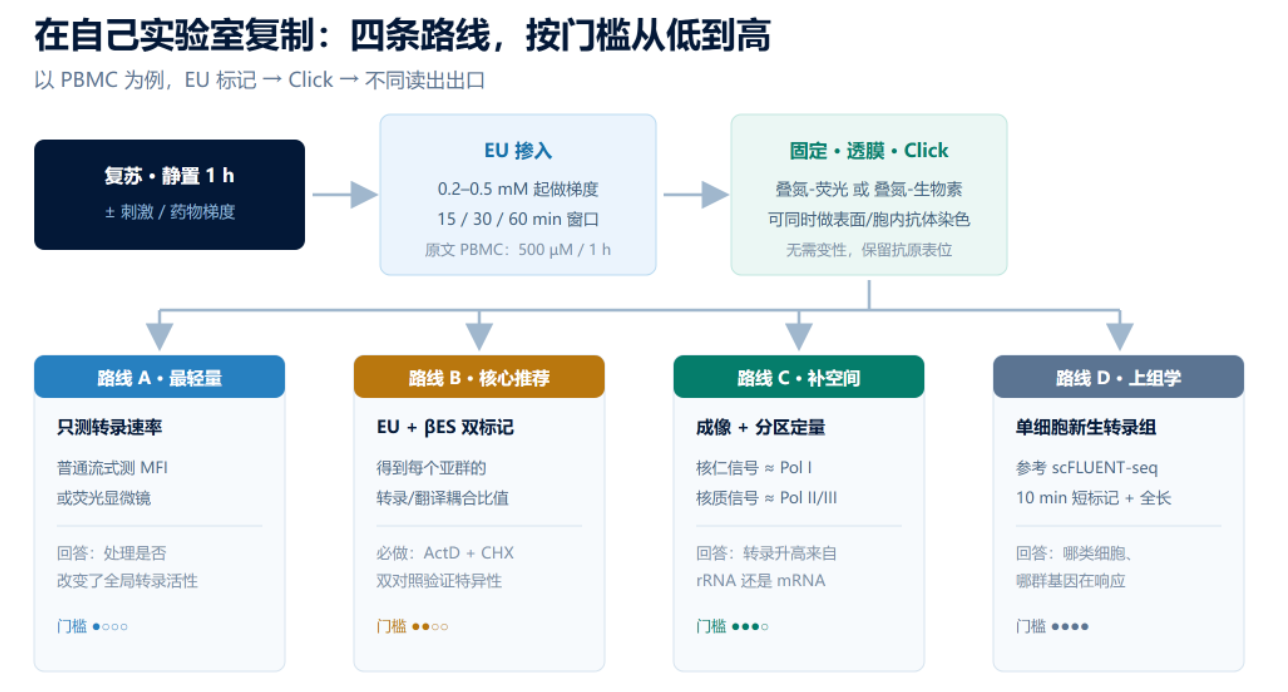
图 2 以 PBMC 为例的四条实施路线(依据原文方法整理)
适用于已有 PBMC 或某类细胞、需快速判断处理是否改变全局转录活性的场景。
读出为每个样本的全局转录速率;若同时做表面染色,可细分至亚群。该方法不依赖特殊仪器,普通流式仪或荧光显微镜即可完成。
适用于需要区分转录改变与翻译改变的场景,也适用于化合物的机制分型。在路线一的基础上,同一批细胞同时加入 βES(原文为 500 µM / 1 h),两个探针共用同一次 Click 反应与同一个荧光基团。结果为每个亚群一对数值(EU-MFI、βES-MFI)及其比值。必须设置 ActD 与 CHX 双对照,否则无法确认两个通道各自的特异性。
适用于关心核内空间分布、或同一孔内响应异质性的场景。Click 后铺片,共聚焦或高内涵成像,按核仁与核质分区定量:核仁信号主要反映 Pol I 的 rRNA 合成,核质信号主要反映 Pol II/III 的 mRNA 及其他小 RNA 合成。
这一点对本预印本的具体发现有直接意义。原文报告的是整体 MFI 升高,但未区分 rRNA 合成与 mRNA 转录的贡献;两者的生物学含义不同,前者指向核糖体产能,后者指向基因表达程序。分区定量可以补上这一层信息。
适用于需要确定哪类细胞、哪群基因在响应的场景。可参考 scFLUENT-seq 的 10 分钟短标记加单细胞全长建库路线。工程难度显著高于前三者:条码化 EU 富集的回收率与背景需在项目层面优化。若目的仅为分亚群的平均速率,路线一配合表面抗体的性价比更高。
原文讨论部分给出了若干延展,其共同点是替换一个变量即可复用整套流程。
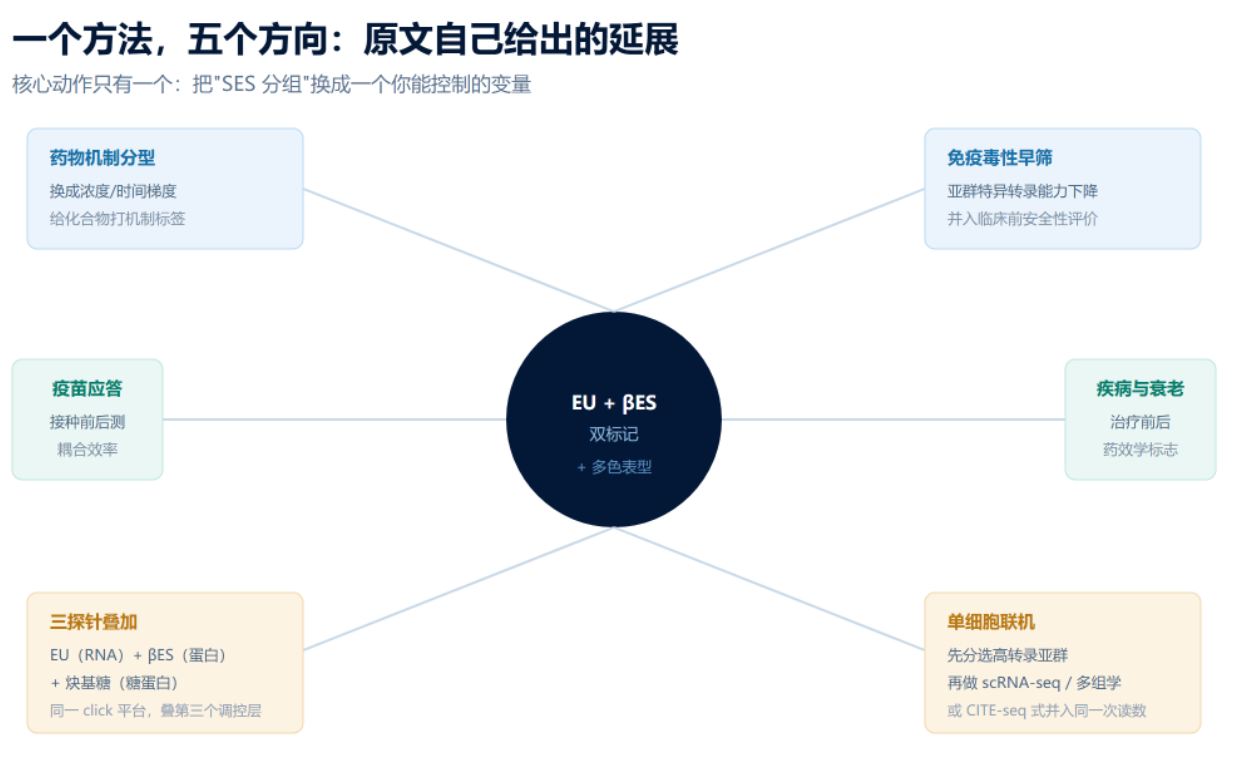
图 3 原文给出的应用拓展方向(依讨论部分整理)
药物机制分型。把 SES 分组替换为药物浓度或时间梯度:混合 PBMC 加药 1–2 h,随后 EU 500 µM / 1 h 标记,多色流式读出各亚群 EU-MFI。一次实验可得到数十个该药对哪类免疫细胞抑制转录最强的读数,其分辨率高于全 PBMC 混测的 RNA-seq,后者会被占比最高的细胞类型稀释。EU 与 βES 联用还可对化合物作机制归类:EU 下降而 βES 不变,指向转录抑制;EU 不变而 βES 下降,指向翻译抑制或 mRNA 稳定性改变;EU 下降后 βES 滞后下降,提示转录抑制的下游传导。
免疫毒性早期筛查。免疫细胞转录能力的亚群特异性下降,可作为免疫抑制或骨髓抑制的早期指标,纳入临床前安全性评价,成本低于全套转录组。
疫苗应答预测。接种前后各测一次 PBMC 的 EU/βES,以转录-翻译耦合效率作为疫苗反应性的细胞学指标。这一方向与原文 CXCR5/IL-21R 的发现相衔接。
疾病监测与免疫衰老。肿瘤、自身免疫病、感染患者治疗前后,免疫亚群转录速率的动态变化可作为药效学指标;年龄、营养状态与慢性炎症对耦合效率的影响,可用同一范式做横断面刻画。
技术层面的叠加。包括三探针方案(EU 标 RNA、βES 标蛋白、炔基糖类似物标糖蛋白,同一套 Click 化学);以 EU 流式分选高转录亚群后再做单细胞测序,或以 CITE-seq 方式将 EU 信号并入多组学读数;设置多个标记窗口(15/30/60 min)拟合各亚群的转录动力学参数;以及组织切片加成像流式或共聚焦的原位版本。
原文亦明确列出了自身的局限:
此外还有一点原文未展开,但直接关系到机制解释:解耦究竟发生在哪一层。转录升高而翻译不变,可能源于翻译起始受抑制(mTOR 通路、eIF4E 磷酸化),可能源于核糖体供给不足(Pol I 活性与 rRNA 合成),也可能源于 mRNA 出核或稳定性改变。成像与分区定量可对其中第一种与第二种作出初步区分:核仁信号反映 rRNA 合成状态,核质信号反映 mRNA 转录状态,两者对照即可判断核糖体产能是否为限制因素。
社会处境在细胞层面留下的痕迹,未必体现在基因组序列或某一个基因的表达量上。本预印本提供的观察是:在同样一套基因组与同一套转录、翻译机器之下,两个过程的速率比例关系在不同 SES 组之间存在系统差异。
这一结论的价值,一部分在于 108 个标志物本身,另一部分在于它示范了一种提问方式:与其只问表达量改变了多少,也可以问合成的速率是多少、转化为蛋白的效率是多少。前者是存量,后者是通量,两者之间隔着降解与加工,不能相互替代。
就方法而言,EU 代谢标记提供的是一个成本可控、时间分辨率较高、可与常规流式或显微成像对接的测速手段。对于做 PBMC 或原代免疫细胞的研究者,它在现有 panel 上增加一到两个通道即可实现,不需要重建技术平台。
参考文献
[1] Cisse M, Huisman W, Singh Y, et al. A cell surface proteomic atlas reveals socioeconomic status associated immune diversity. bioRxiv 2026.03.07.707513
[2] Xiong H, Amado-Ruiz D, Lodder TR, et al. Social status impacts T-cell responses through synapse strength in the prefrontal cortex. Cell Res 2026. DOI: 10.1038/s41422-026-01235-7
[3] Ma S, Hong Y, Chen J, Xu J, Shen X. Single-cell nascent transcription reveals sparse genome usage and plasticity. Cell 2025. DOI: 10.1016/j.cell.2025.09.003
[4] Ignacio BJ, Dijkstra J, Mora N, et al. THRONCAT: metabolic labeling of newly synthesized proteins using a bioorthogonal threonine analog. Nat Commun 2023;14:3367
[5] Jao CY, Salic A. Exploring RNA transcription and turnover in vivo by using click chemistry. PNAS 2008;105(41):15779-15784
[6] Kjosavik MA, Garschall K, Steinmetz PRH. The nascent RNA labelling compound 5-ethynyl uridine (EU) integrates into DNA in some animals. BMC Mol Cell Biol 2025
[7] Sanada M, Miyano T, Iwadare S. beta-Ethynylserine, an antimetabolite of L-threonine, from Streptomyces cattleya. J Antibiot 1986;39(2):304-305
本文依据公开预印本与已发表文献整理,数值均引自原文。所引预印本未经同行评议,引用请注明来源与版本。文中方法参数为复现参考,具体条件请按自身体系优化。THRONCAT 一节的化学定性与本预印本原文表述存在差异,已在正文中注明。
